Es la araña tigre (Scytodes globula) un posible agente de control biológico de la araña del rincón (Loxosceles laeta): Una aproximación experimental.
IS THE TIGER SPIDER (SCYTODES GLOBULA) A POSSIBLE EFFECTIVE BIOLOGICAL CONTROL AGENT OF THE BROWN SPIDER (LOXOSCELES LAETA)?: AN EXPERIMENTAL APPROACH.
Se ha propuesto que la araña tigre Scytodes globula es un predador natural de la araña del rincón Loxosceles laeta, causante del loxoscelismo en Chile, hecho hasta ahora sólo parcialmente avalado por datos ocasionales. En este proyecto propusimos que para que una araña pueda regular la población de otra no basta sólo que una deprede sobre la otra en un encuentro programado sino que i) deben compartir el micro-habitat, aumentando la probabilidad de encuentro, ii) debe predar habitualmente sobre esta e iii) debe afectar la mortalidad o o fecundidad de la presa, las que fueron las hipótesis de este estudio.
Microambientes preferentes Nicho y distribución:
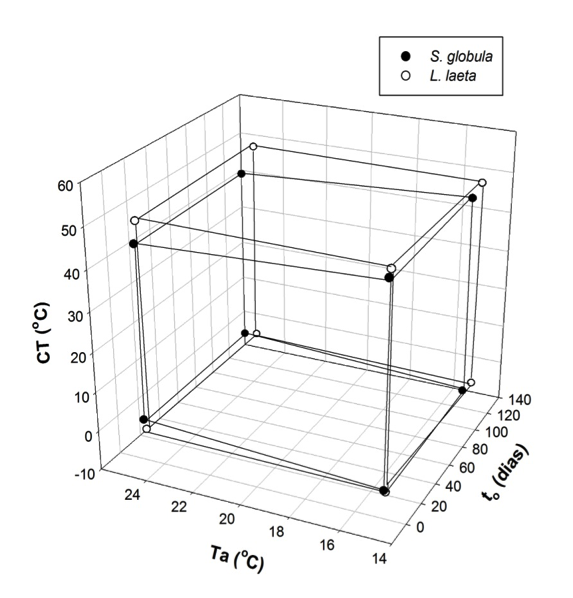
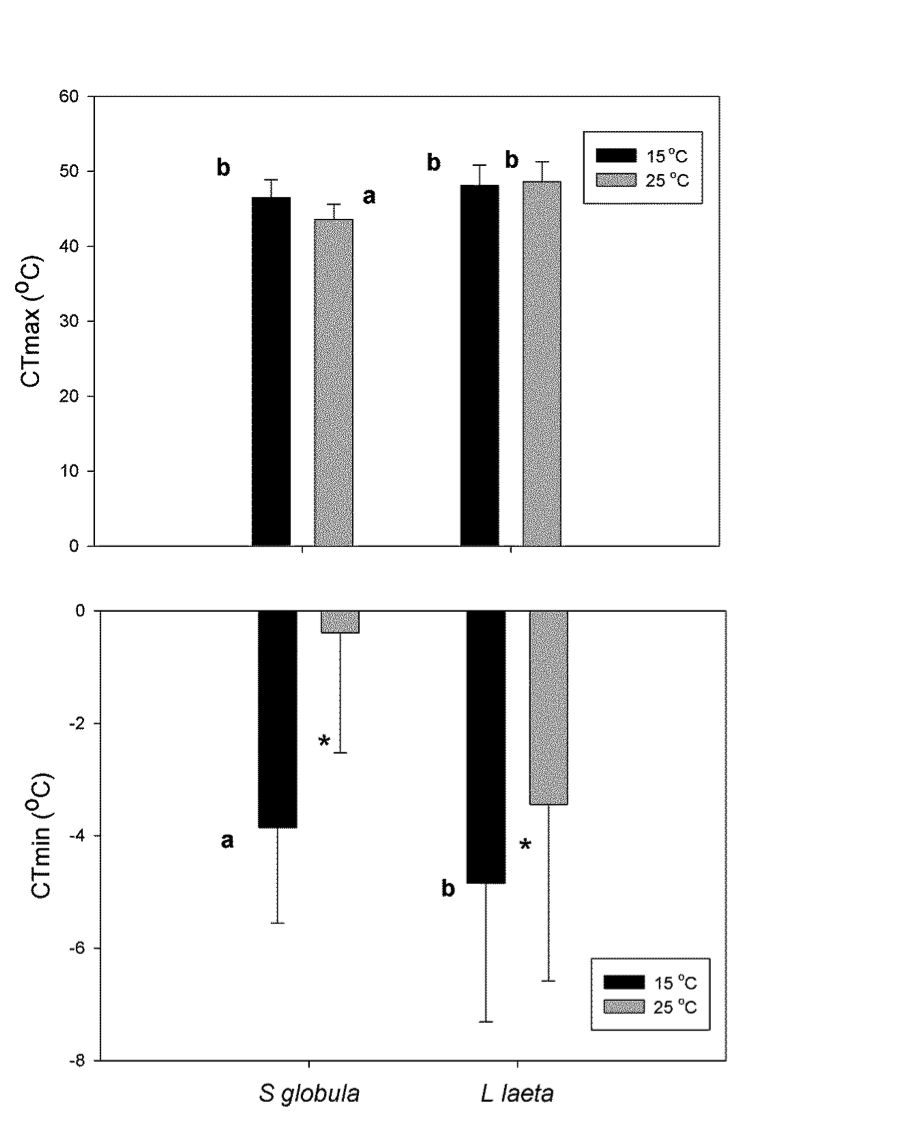
Exploramos los microambientes preferidos por las dos especies. Estudiamos las temperaturas preferidas, las temperaturas críticas y la tolerancia a la desecación y pérdida de agua en ambas especies. Observamos que ambas especies prefieren ambientes térmicos similares con una sobreposición de más del 80% y tienen similares pérdidas de agua y tolerancia a la desecación. Además ambas especies son nocturnas. Estas características implican que sus microhabitat escogidos son muy similares, indicando una alta posibilidad de encuentro y depredación.
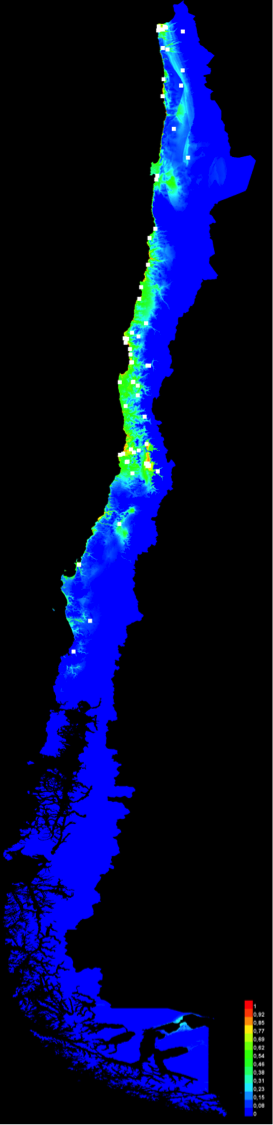
Aunque la temperatura fue un eje fundamental en explicar la distribución de éstas especies, su efecto fue discimil siendo más importante en L.laeta que en S. globula. La proyección desde el laboratorio a la distribución potencial de L.laeta fue relativamente buena, pero no así en el caso de S. globula. La huella humana es un factor importante en explicar la distribución de L laeta y en en un grado mucho menor en el caso de S. globula. Efectivamente en laboratorio existió una amplia sobreposición de los diferentes ejes del nicho que permiten inferir que sus microambientes preferidos son similares, pero esto no se proyecta a la distribución potencial donde la sobreposición es menor y son otros ejes bioclimáticos como la temperatura en L. laeta y las precipitaciones en S. globula, y con otra oferta los que permiten explicar su distribución potencial.
Interacción directa y efecto poblacional:
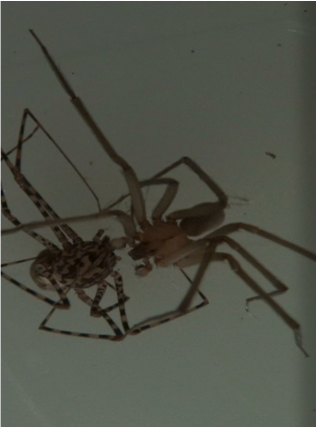
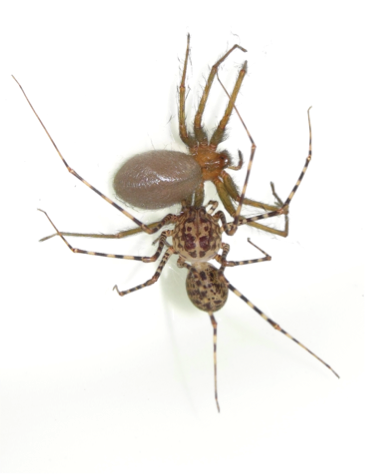
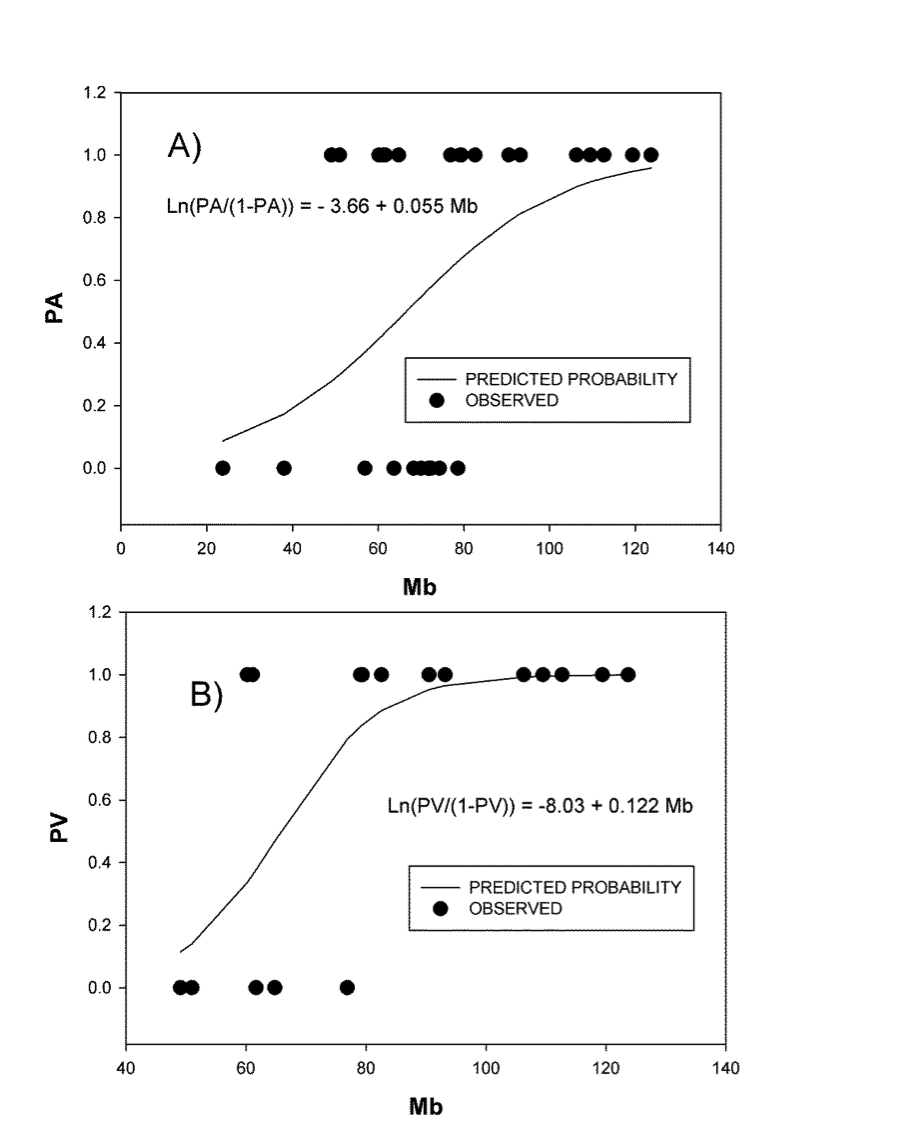
Se realizaron encuentros individuales entre ambas especies en horas de actividad, encontrando que la probabilidad de depredación de L .laeta por parte de S. globula algo mayor de un 40%. Se encontró además que el mejor predictor de encuentro agresivo y victoria es el peso de la araña tigre, lo que revela que en estos encuentros es importante la experiencia del predador. Todas las arañas mayores a 85 mg desplegaron una acción agresiva y mataron a la araña del rincón independiente de la masa corporal de ésta. Así, la masa corporal de S. globula, probablemente relacionada a la experiencia depredadora es el mejor predictor de un acto agresivo y la depredación de L. laeta. También se observó que ocasionalmente L. laeta puede depredar a S. globula.
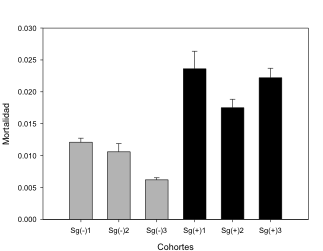
Se mantuvieron tres cohortes de arañas del rincón desde su nacimiento en cajas plásticas a temperatura y humedad relativas ambiente, sin presencia de arañas tigre y otras tres en el mismo ambiente, pero con presencia constante de arañas tigre. Los resultados mostraron que la mortalidad de la araña del rincón es el doble cuando se encuentra el depredador, que cuando no se encuentra. Así S. globula cumple con las tres premisas estudiadas: i) comparte el microambiente, ii) depreda a L. laeta e iii) produce un efecto poblacional en ella; siendo una especie elegible para el control biológico de L. laeta. Este efecto probablemente sólo se hace significativo con ejemplares adultos de buen tamaño del depredador. Al modelar con matrices de proyección el crecimiento poblacional de estas arañas se obtuvo que el efecto poblacional de S. globula sobre la población de L. laeta es de aproximadamente un 20%. Posiblemente la presencia de S. globula es un factor que ayuda al control poblacional de L. laeta pero como factor único es insuficiente para su control.
|
|
|
|
|
|
|
|
|
Figura 5: Predicciones de la probabilidad de encuentros agresivos (PA) y de la probabilidad de victoria (PV) de la araña tigre (S. globula) en función de la masa corporal. |
Figura 6: Distribución potencial de la araña del rincón (L. laeta) que puede ser interpretado como mapa de riesgo de Loxoscelismo. |